proyecto cell · del átomo al cromosoma
Laboratorio cell
Simuladores del ADN construidos desde la física atómica, fase a fase: cada visor se conserva tal como cerró su fase, para poder volver a él y seguir pensando. Todos funcionan con doble clic; para el reproductor F5 conviene el servidor local (abrir_laboratorio.bat).
Material didáctico de atroPELLO Games. La pregunta del proyecto: partiendo de las leyes básicas que rigen los átomos, y de algo de química de enlaces precocinada, ¿se puede simular la naturaleza hasta algo tan bello y complejo como el ADN? Todo corre en tu navegador salvo los tres experimentos en directo de F9a–c, que necesitan OpenMM en una GPU local (README). Para orientarte, empieza por el análisis o por el cuaderno de preguntas.
Visores y sandboxes
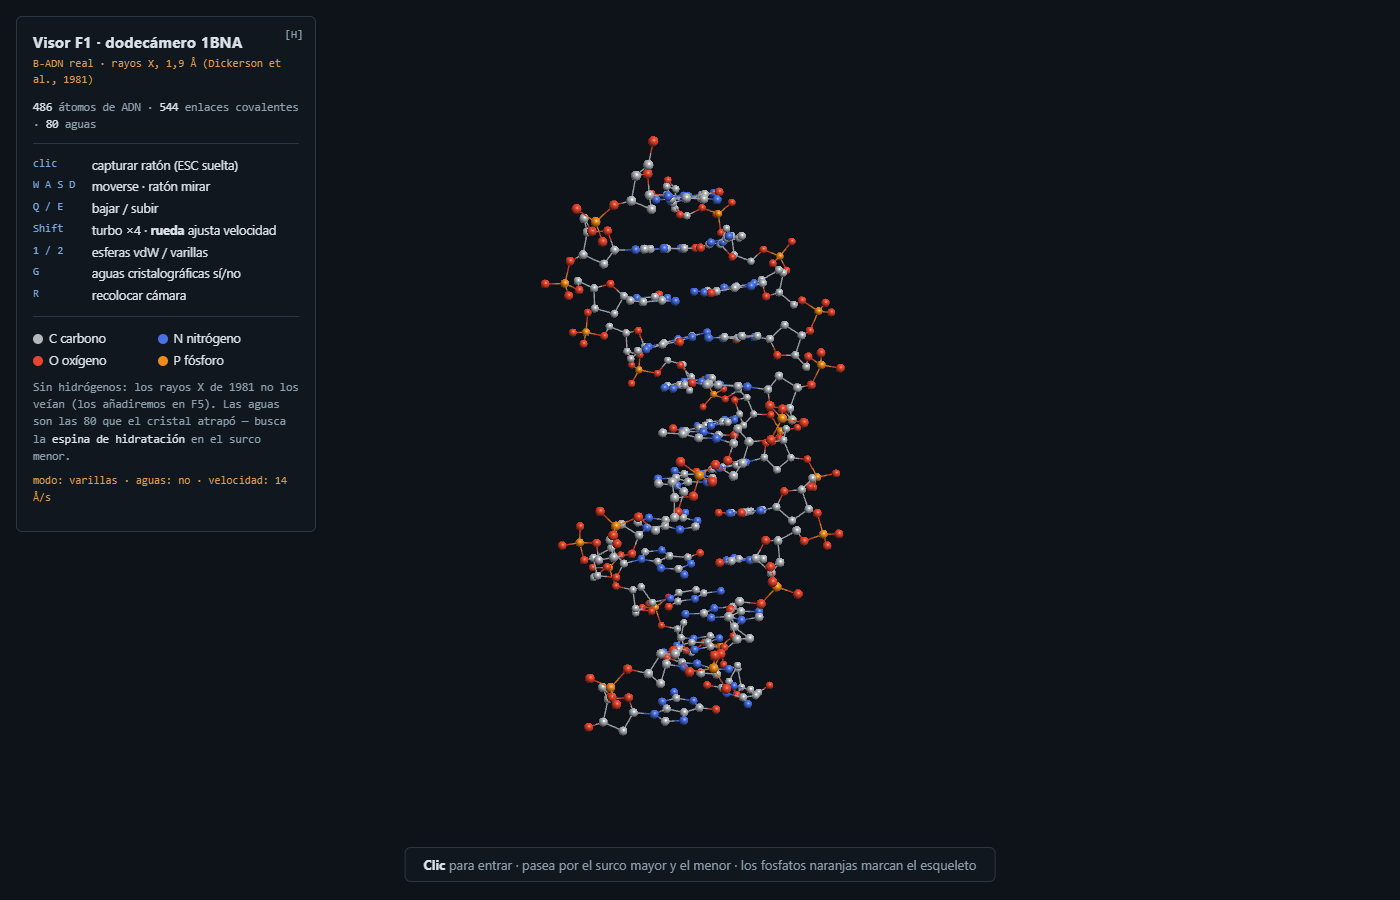
Visor del cristal 1BNA
El B-ADN real medido por rayos X (Dickerson, 1981), sin física: la foto de referencia del proyecto y el banco de pruebas del renderizado.
- 486 átomos + 80 aguas cristalográficas embebidos (sin conexión)
- esferas vdW / varillas · aguas sí/no · auto-orientación
- cámara de nave: ratón capturado, WASD, alabeo Q/E
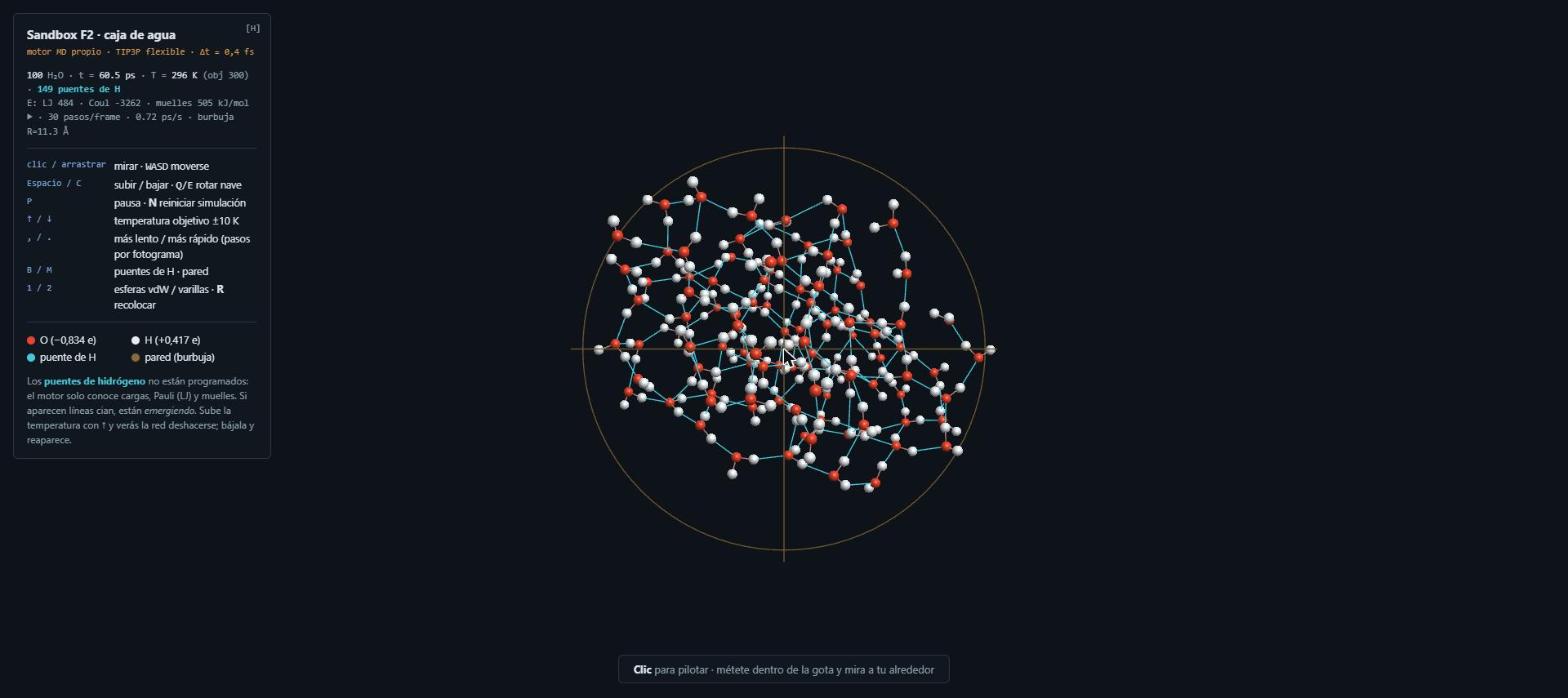
Caja de agua
Motor de dinámica molecular propio (~300 líneas legibles): 100 H₂O TIP3P en una burbuja. Los puentes de hidrógeno(1) no están programados: emergen de cargas + Pauli.
- Verlet + LJ + Coulomb + muelles + Langevin · Δt 0,4 fs
- temperatura en vivo (↑/↓): funde, hierve, recondensa
- detector de puentes (cian) que solo observa
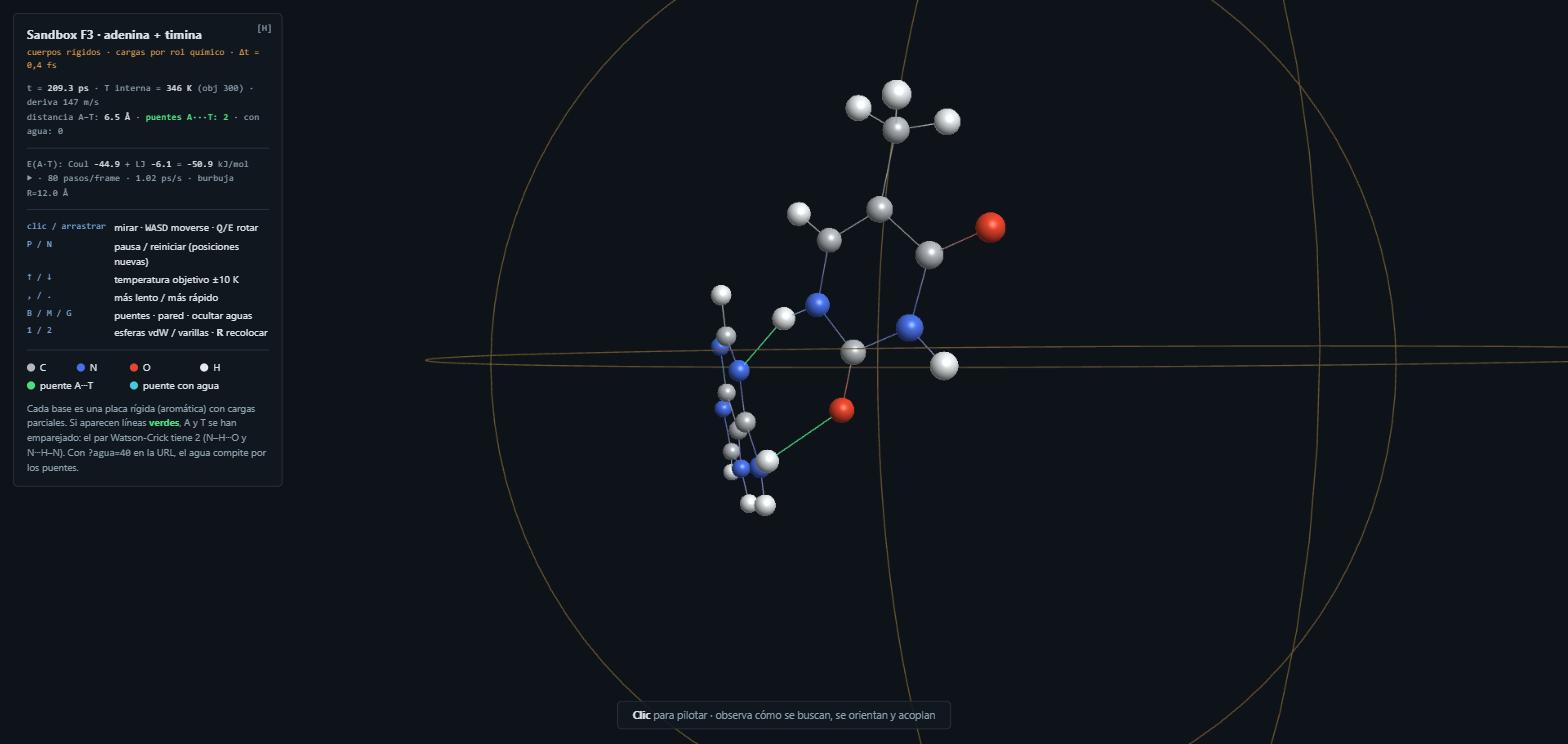
Adenina + timina
Las dos bases como placas rígidas (tensor de inercia + cuaterniones) con cargas por rol químico. En vacío se buscan, se orientan y acoplan con 2 puentes (E ≈ −55 kJ/mol); con agua, la solvatación compite.
- geometrías 3D reales (PubChem) con hidrógenos
- medidor de energía por términos: E(A·T), base·agua, agua·agua
- T interna con centro de masas restado + deriva colectiva
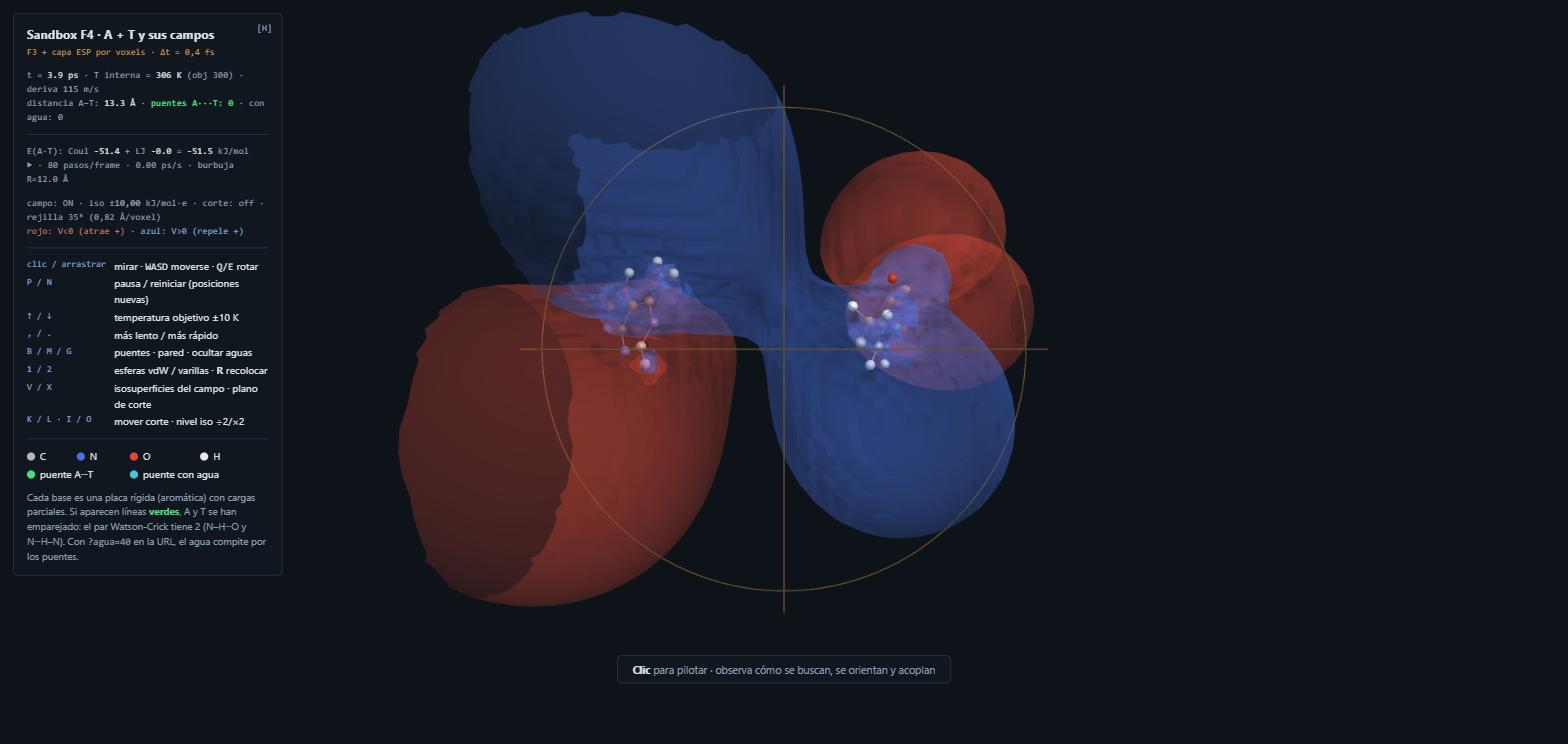
A + T con su campo eléctrico
El sandbox de F3 más la capa ESP (campo.js): el potencial en voxels con isosuperficies y corte TAC. Rojo = V<0 (atrae +), azul = V>0. Y con J, el mismo campo vestido por el medio: ÷80 del agua y recorte de Debye por la sal, en vivo.
- V isosuperficies · X corte · K/L moverlo · I/O nivel
- J vacío ↔ medio (ε=80 + sal) · 7/8 sal ÷2/×2 (λ_D en el HUD)
- surface nets + normales por gradiente, en vivo
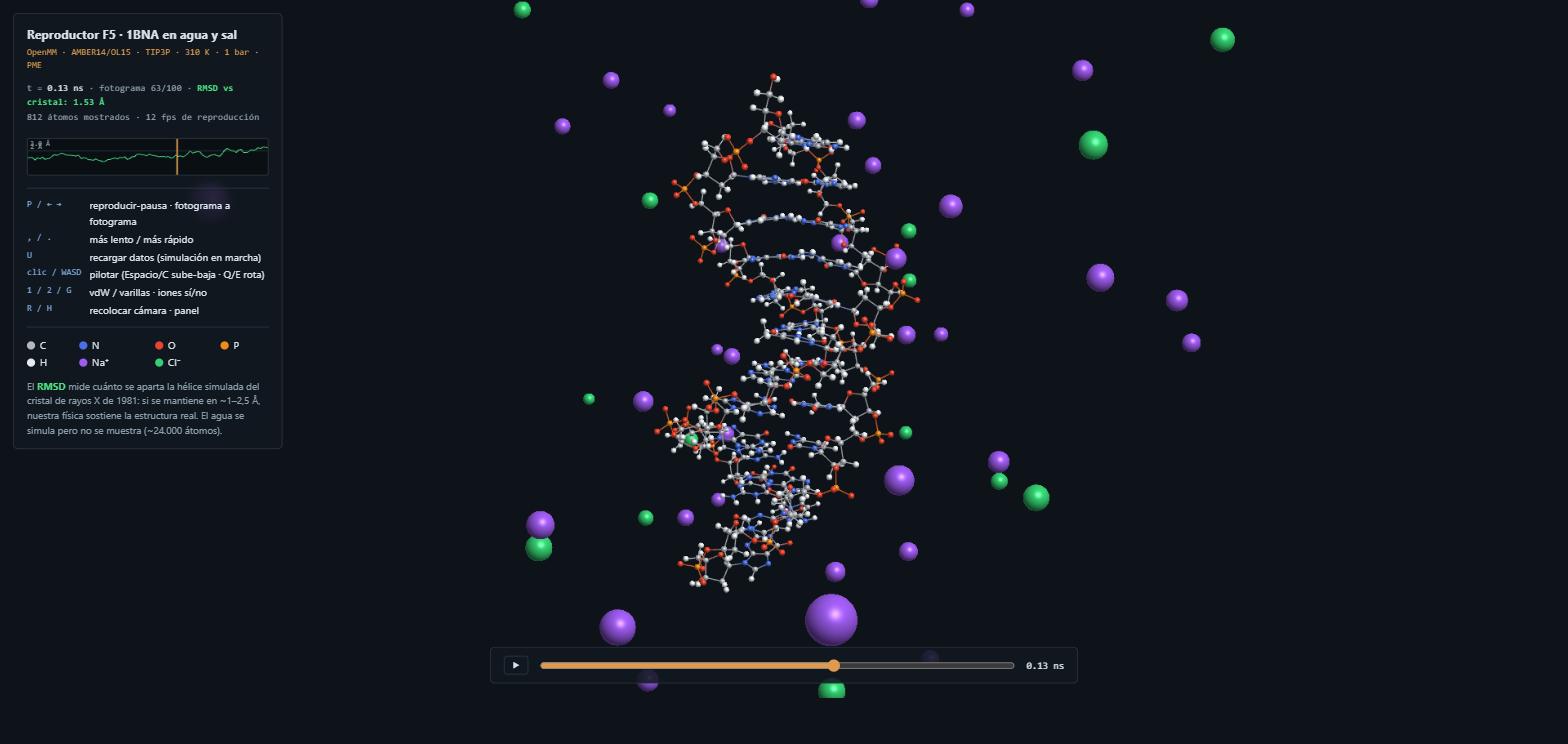
Reproductor de trayectorias OpenMM
El 1BNA con física de investigación: AMBER14/OL15, 18.416 átomos (agua y sal explícitas), SHAKE + PME a 310 K. RMSD(1) contra el cristal en cada fotograma (~1,6 Å: la hélice se sostiene).
- línea de tiempo, gráfica RMSD, interpolación suave
- U recarga el fichero mientras la simulación corre
- datos: python f5_simular.py --test (o --ns 100)
Con doble clic pedirá el fichero a mano; con el servidor local carga trayectorias/f5_visor.bin solo.
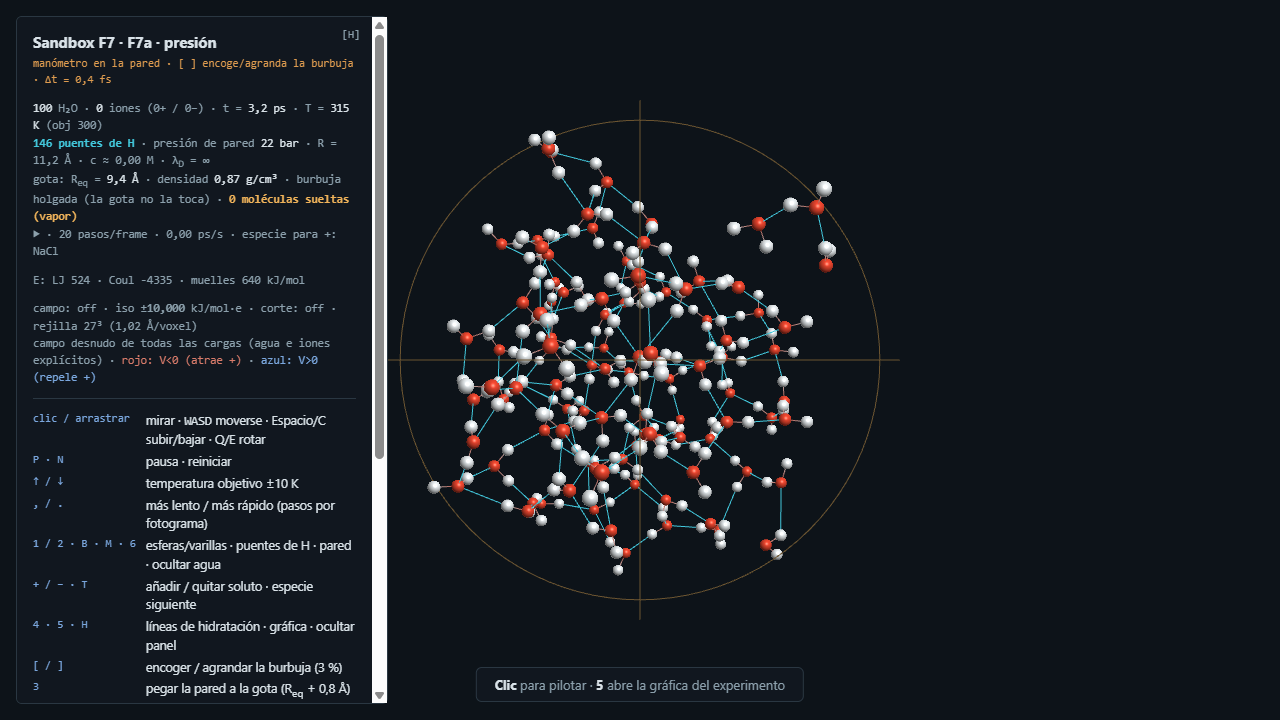
Manómetro en la pared
La presión no está programada: es la fuerza media que la pared de la burbuja hace para contener los choques, dividida por su área (P21). Encoge la burbuja con [ y verás dispararse la presión mientras la densidad apenas sube: el agua no cede. Agrándala y aparece vapor.
- 3 pega la pared a la gota · [ ] ±3 % de radio · 5 gráfica P(t)
- medido: de ~0 bar (holgada) a ~900 bar al encoger un 24 %
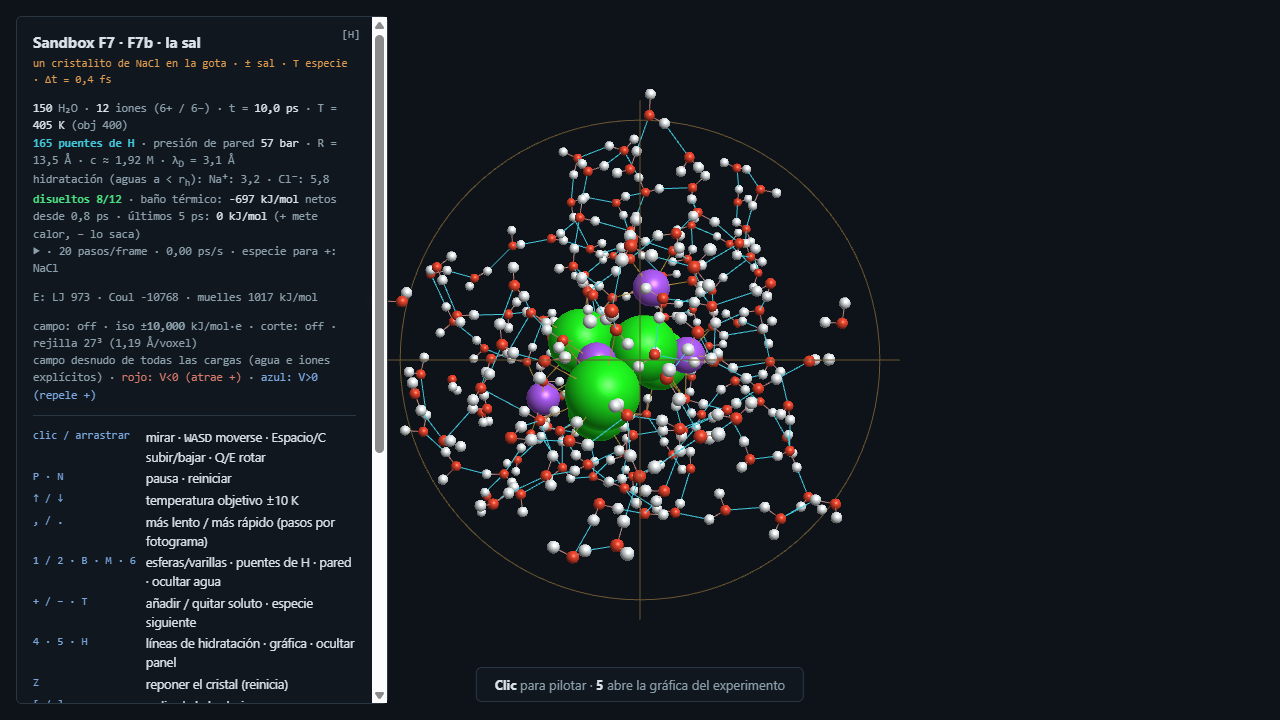
Un cristalito de NaCl en la gota
Doce iones de sal de roca (parámetros del amber14/tip3p.xml de OpenMM) en 150 aguas. El cristal no sabe que debe disolverse: solo hay Coulomb, Pauli y agua. Las esquinas se van primero y cada ion sale abrigado por su capa de hidratación (líneas ámbar).
- + − añadir/quitar sal · T NaCl → KCl → MgCl₂ → CaCl₂ → neutro · 6 ocultar agua
- medido: a 300 K el cristal aguanta decenas de ps; a 400 K la mitad se ha ido en 10 ps
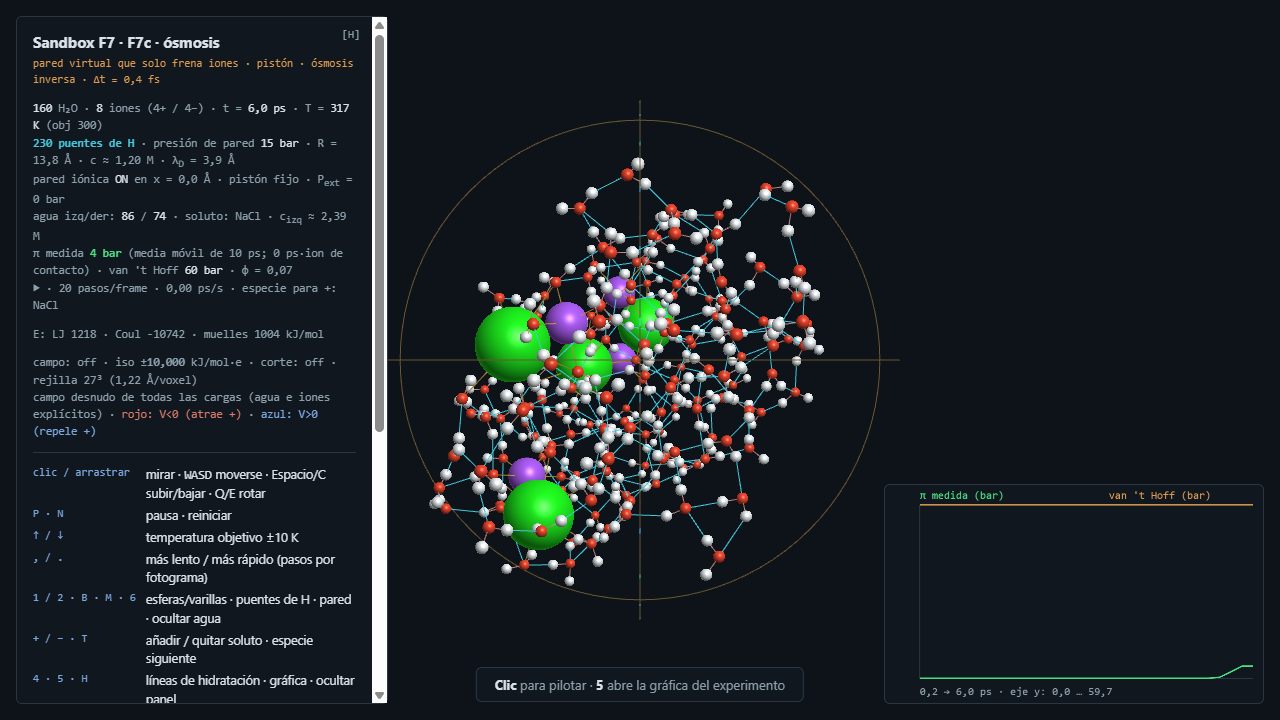
Pared virtual que solo frena iones
El método de Luo y Roux (2010): un plano semiarmónico que solo actúa sobre el soluto; el agua lo cruza. La fuerza media de los iones contra él, por área, es la presión osmótica(1), comparada con van 't Hoff. Con el pistón libre el lado salado crece; apretando por encima de π, el agua se escapa al lado puro: desalación.
- G pared · 3 pistón libre · Y U presión externa ±10 bar · T soluto neutro (misma π)
- medido: pistón libre avanza hacia el agua pura; a 300 bar retrocede y π sube a ~90 bar (van 't Hoff ~60)
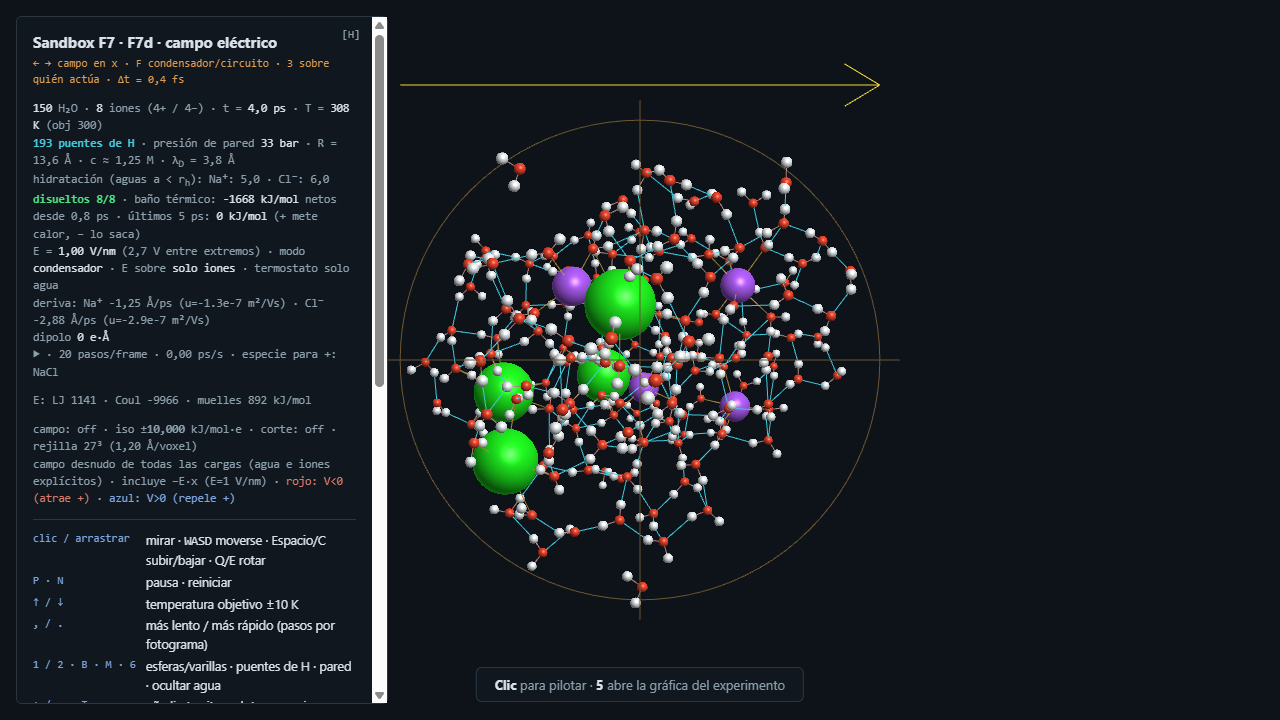
Electroforesis en una gota
Un campo uniforme empuja a los iones y el agua los frena: la deriva es la movilidad(1). En modo condensador se apilan en la superficie (doble capa; con V se ve el potencial aplanarse); en modo circuito los que llegan reaparecen enfrente y hay corriente. Con 3 el campo actúa también sobre el agua y la gota se polariza como un dieléctrico: el campo interior cae ×27 y la deriva muere.
- ← → campo ±0,25 V/nm · 0 apagar · F condensador/circuito
- medido a 1 V/nm: Na⁺ ≈ +1 Å/ps, Cl⁻ ≈ −0,7 Å/ps (movilidades del orden de las reales, 5–8·10⁻⁸ m²/V·s)
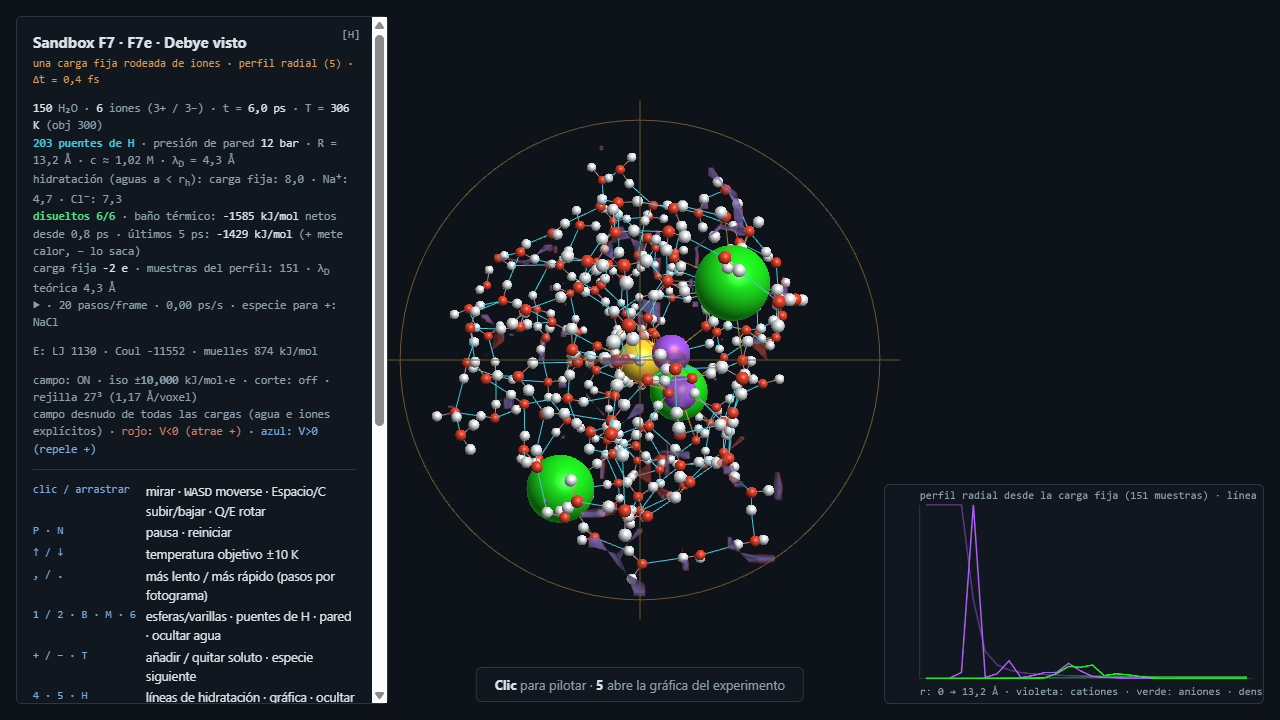
Una carga fija rodeada de iones
En F6 el apantallamiento(1) era una fórmula (tecla J). Aquí emerge: los contraiones se arremolinan alrededor de la carga amarilla, la isosuperficie de su campo se encoge al añadir sal, y la gráfica acumula el perfil radial de cationes y aniones frente a la curva de Debye–Hückel.
- 9 carga −3 → +2 · + − sal · V campo · 5 perfil radial
- medido: con −2 e un Na⁺ se pega en contacto (par iónico); el perfil necesita cientos de ps de promedio
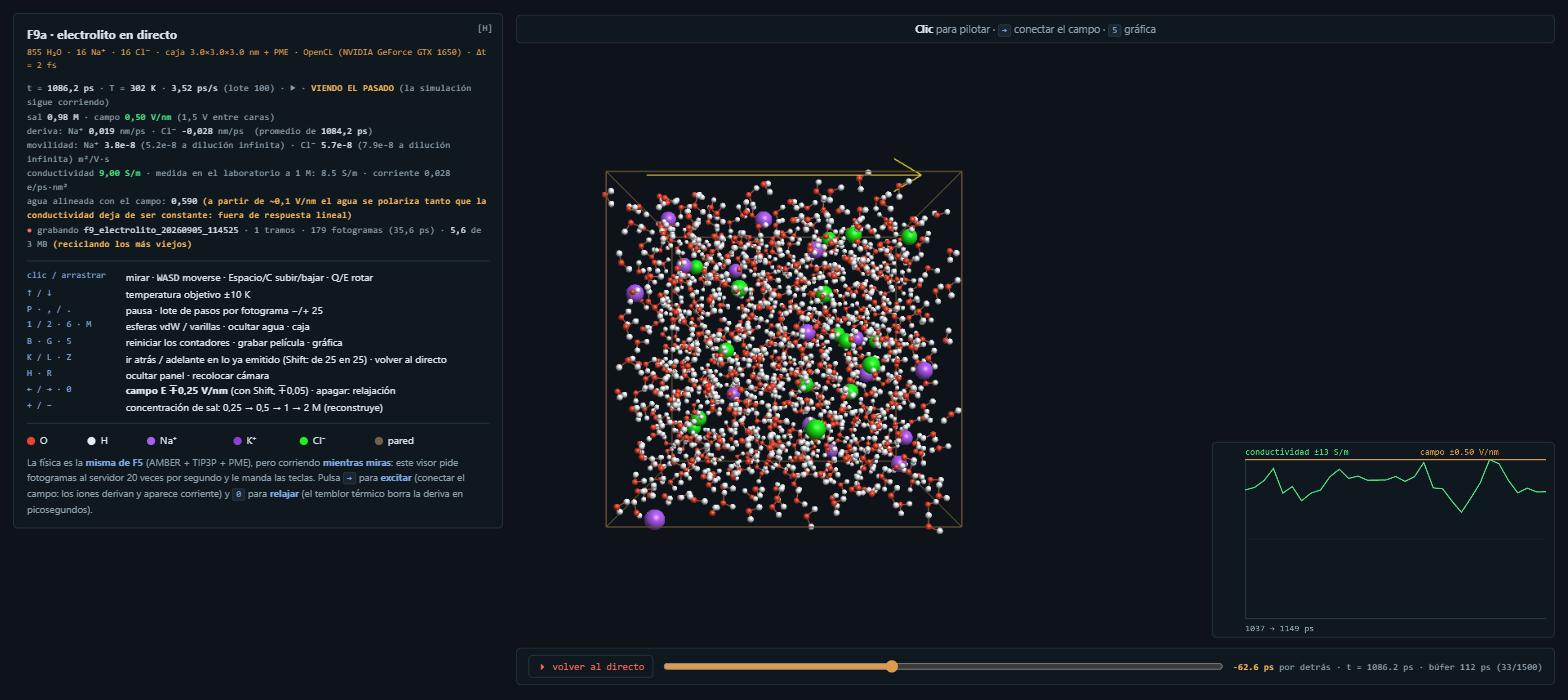
Un electrolito excitable, corriendo mientras miras
La tercera vía: la física de investigación (AMBER + TIP3P + PME, la misma de F5) en la GPU mientras miras, sirviendo fotogramas al visor 20 veces por segundo y recibiendo las teclas de vuelta. Pulsa → y el campo excita el electrolito: los iones derivan y nace una corriente. Pulsa 0 y se relaja en picosegundos. De la deriva salen la movilidad(1) y la conductividad, y se comparan con las tablas ahí mismo.
- medido a 1 M: σ = 8,8 S/m frente a los 8,5 experimentales; Na⁺ 4,1·10⁻⁸ y Cl⁻ 5,4·10⁻⁸ m²/V·s (reales 5,2 y 7,9)
- 2.597 átomos a 4–6 ps/s en la GTX 1650: entre 15 y 25 veces el motor JS de F7
- + − cambian la sal en vivo (reconstruye) · G graba la sesión como película de F5
Necesita el servidor: abrir_laboratorio.bat lo arranca en su propia ventana, o a mano python f9_servidor.py.
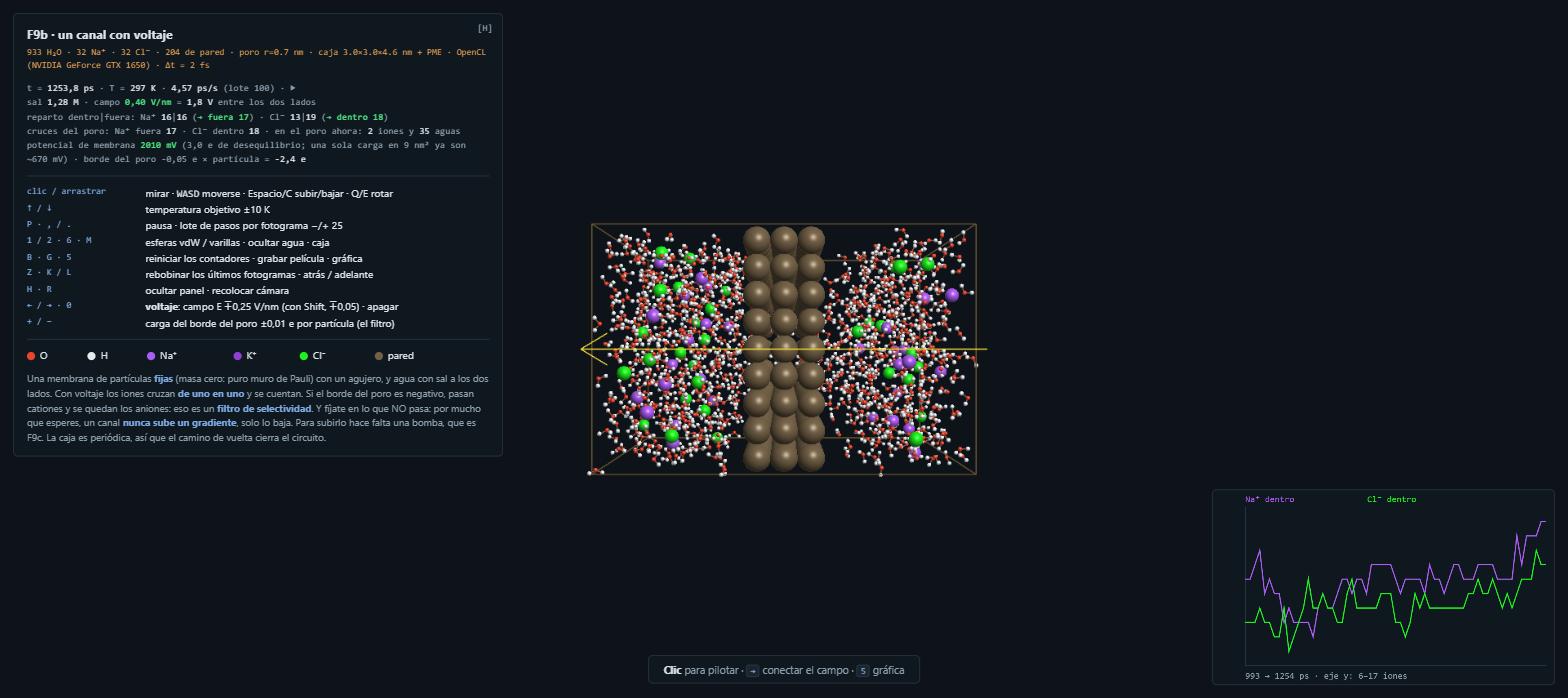
Una membrana con un agujero
Una membrana de partículas fijas (masa cero: puro muro de Pauli(1)) con un poro de 1,4 nm, agua y sal a los dos lados, y voltaje. Los iones cruzan de uno en uno y se cuentan. El borde del poro lleva carga ajustable: súbela y se convierte en un filtro que deja pasar cationes y rechaza aniones.
- medido a 1,8 V: ~35 cruces en 1,2 ns, con 2 iones y 35 aguas dentro del poro en todo momento
- el poro tiene que estar mojado: uno estrecho e hidrófobo se seca solo y deja de conducir
- y lo que no pasa: un canal nunca sube un gradiente(1), solo lo baja
Los tres experimentos de F9 comparten servidor, porque cada uno ocupa la GPU entera: al abrir esta tarjeta el visor le pide que monte el poro, y en unos segundos lo tienes.
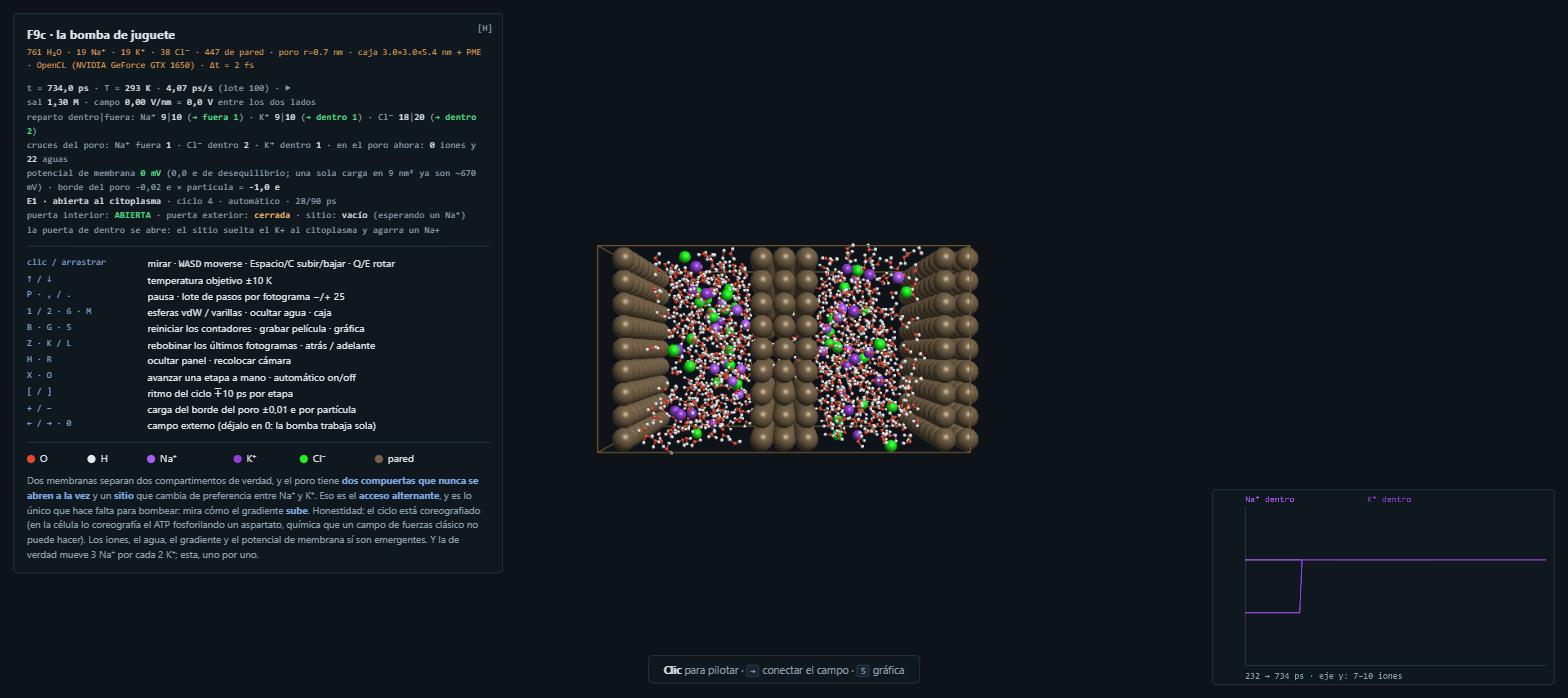
Acceso alternante: subir un gradiente
Dos membranas separan dos compartimentos de verdad, y el poro tiene dos compuertas que nunca se abren a la vez y un sitio que cambia de preferencia entre Na⁺ y K⁺ y se desplaza hacia el lado abierto. Eso es todo lo que hace falta para bombear: el gradiente sube, y con él nace un potencial de membrana(1).
- medido: ~2 Na⁺ afuera y 2 K⁺ adentro cada 3 ciclos, a ~45 s de reloj por ciclo
- honestidad: el ciclo está coreografiado (en la célula lo dirige el ATP(1), química fuera del alcance clásico); los iones, el agua, el gradiente y el potencial sí emergen
- la de verdad mueve 3 Na⁺ por cada 2 K⁺, y por eso genera corriente; esta, uno por uno
Igual que F9b: al abrir la tarjeta el visor le pide al servidor que monte la bomba, y en unos segundos está. Después, cada ciclo son unos 45 segundos de reloj; déjalo un rato y verás subir el gradiente.
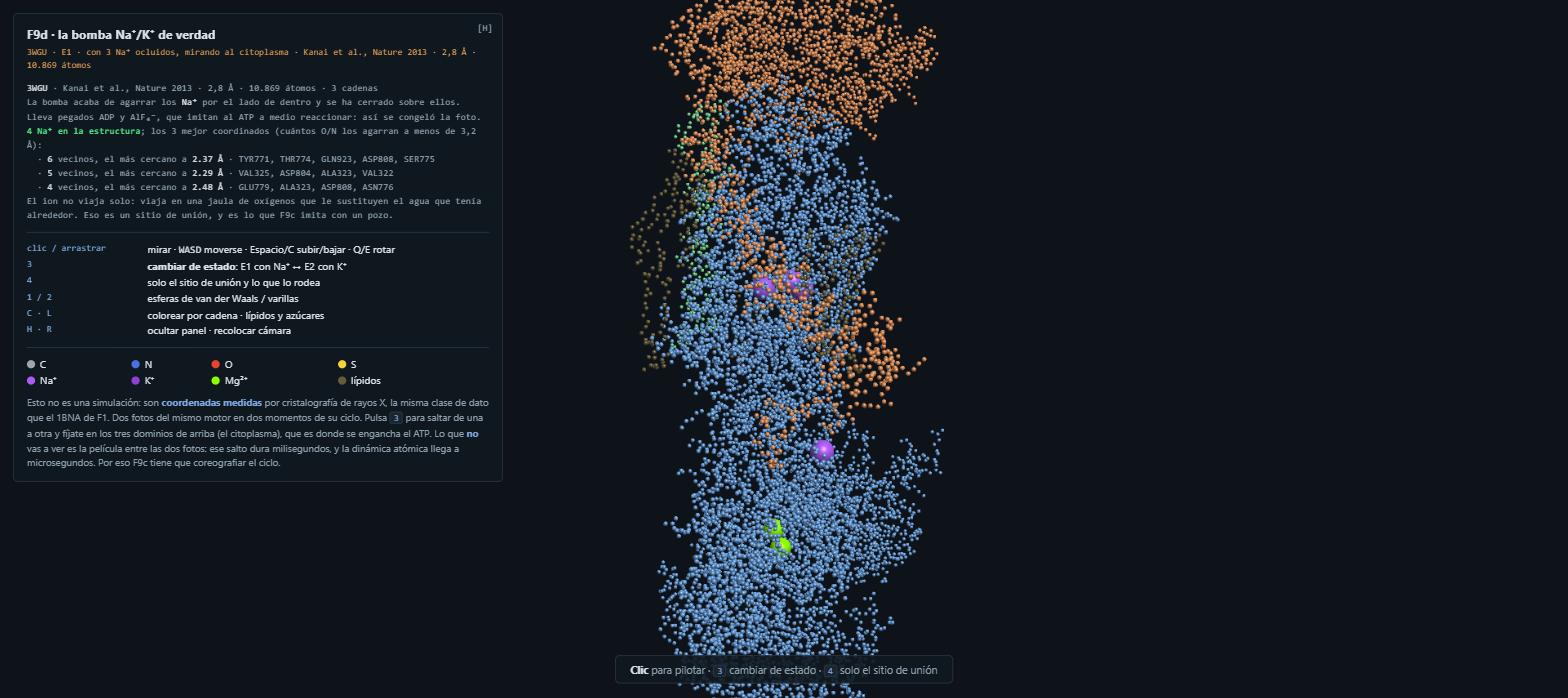
Dos fotos del mismo motor
No es una simulación: son coordenadas medidas por rayos X, como el 1BNA de F1. 3WGU con sus 3 Na⁺ ocluidos mirando al citoplasma, y 2ZXE con 2 K⁺ mirando al exterior. El visor busca solo los oxígenos que agarran cada ion: esa jaula es el sitio de unión(1) que F9c imita con un pozo.
- encontrado en los datos: Na⁺ coordinado a 2,3–2,5 Å por Tyr771, Thr774, Ser775, Asp808, Asn776…
- y el K⁺, a 2,7 Å: más grande, se coordina más lejos. La diferencia entre los dos iones, visible
- lo que no verás: la película entre las dos fotos. Ese salto dura milisegundos
No necesita servidor de simulación, solo el local para leer data/.
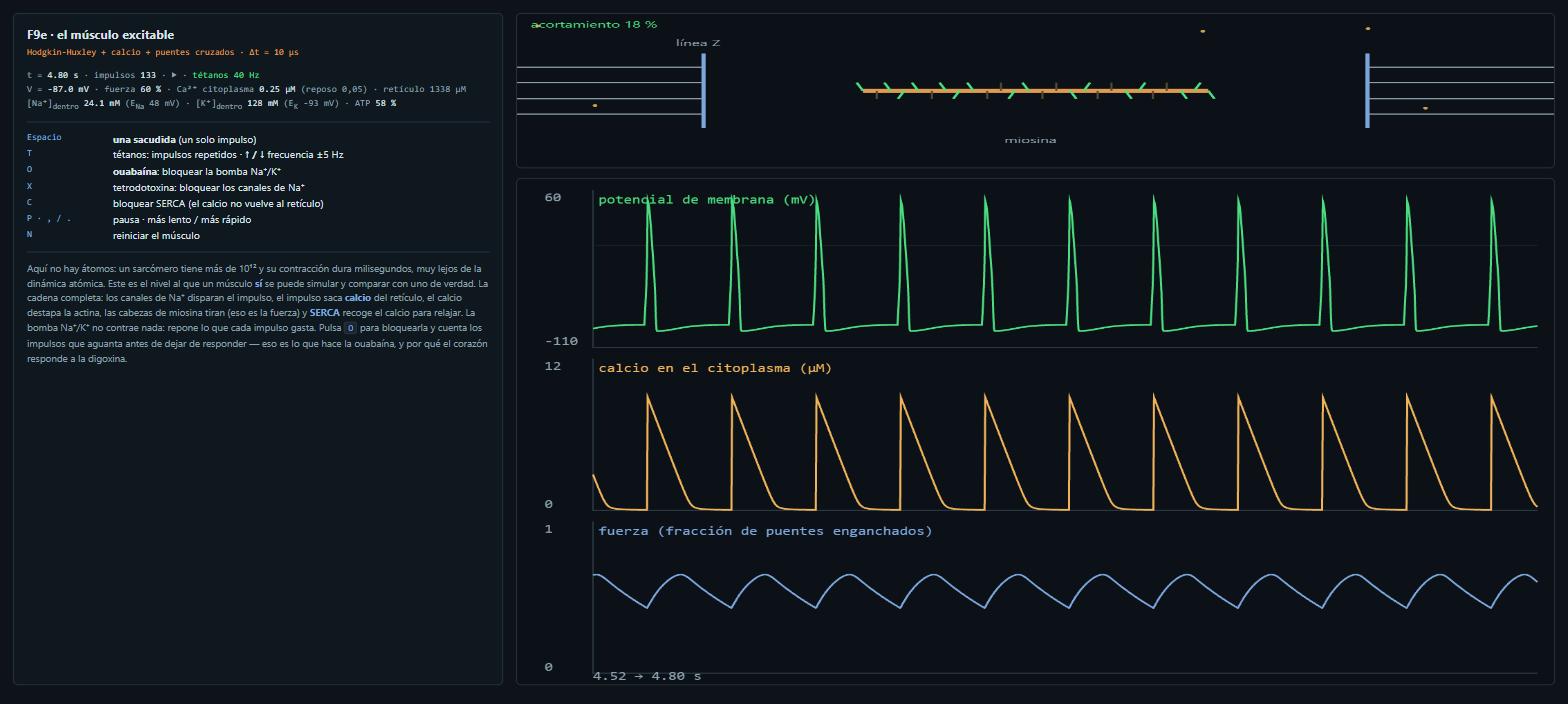
Excitar, contraer, relajar… y recargar
Aquí no hay átomos: un sarcómero tiene más de 10¹² y su contracción dura milisegundos. Este es el nivel al que un músculo sí se puede simular. Los canales de Na⁺ disparan el impulso, el impulso saca calcio, el calcio destapa la actina, la miosina tira, y SERCA recoge el calcio para relajar.
- una sacudida llega al 51 % de fuerza; a 40 Hz los impulsos se funden en un tétanos
- bloquea la bomba con O (ouabaína(1)) y cuenta los impulsos hasta que deja de responder
- reposo −85 mV, calcio de 0,05 a 9 µM, ATP(1) bajando con el trabajo: los números de un músculo
No necesita nada: es JavaScript puro, se abre incluso con doble clic.
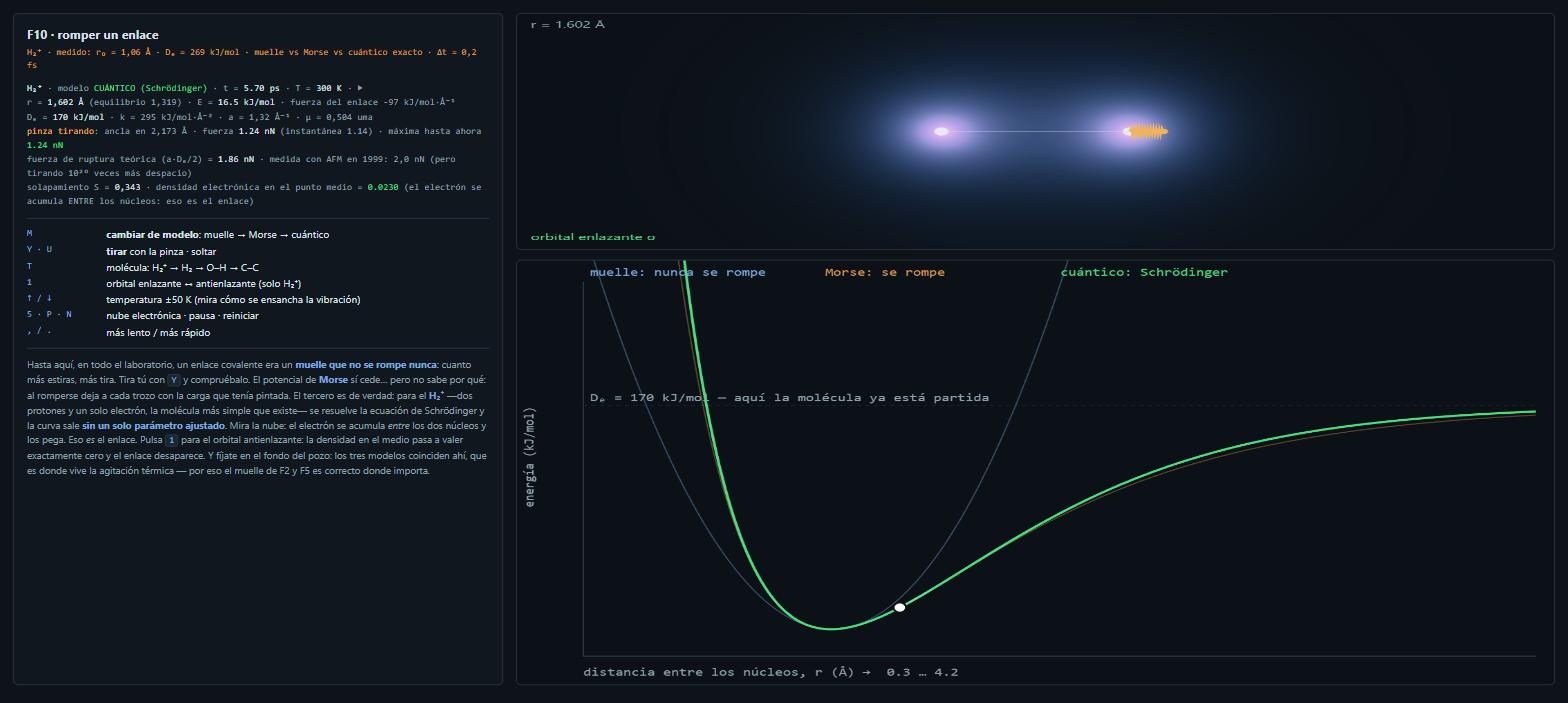
Muelle, Morse… y la ecuación de Schrödinger
En todo el laboratorio un enlace covalente ha sido un muelle que no se rompe nunca. Aquí tiras de uno con una pinza hasta partirlo, con tres modelos dibujados sobre la misma curva. El tercero es de verdad: para el H₂⁺ —dos protones y un solo electrón— se resuelve la ecuación de Schrödinger y la curva sale sin un solo parámetro ajustado. Y se ve el enlace: densidad electrónica acumulada entre los dos núcleos.
- el cálculo da r₀ = 1,319 Å y Dₑ = 170 kJ/mol, los valores LCAO de libro
- fuerza de ruptura medida frente a la teórica: H₂⁺ 1,81 vs 1,86 · O–H 8,71 vs 9,35 · C–C 6,06 vs 6,15 nN
- con 1, el orbital antienlazante: la densidad en el medio pasa a cero exacto y no hay enlace
JavaScript puro, sin servidor ni dependencias: la cuántica cabe en unas pocas líneas cuando la molécula tiene un solo electrón.
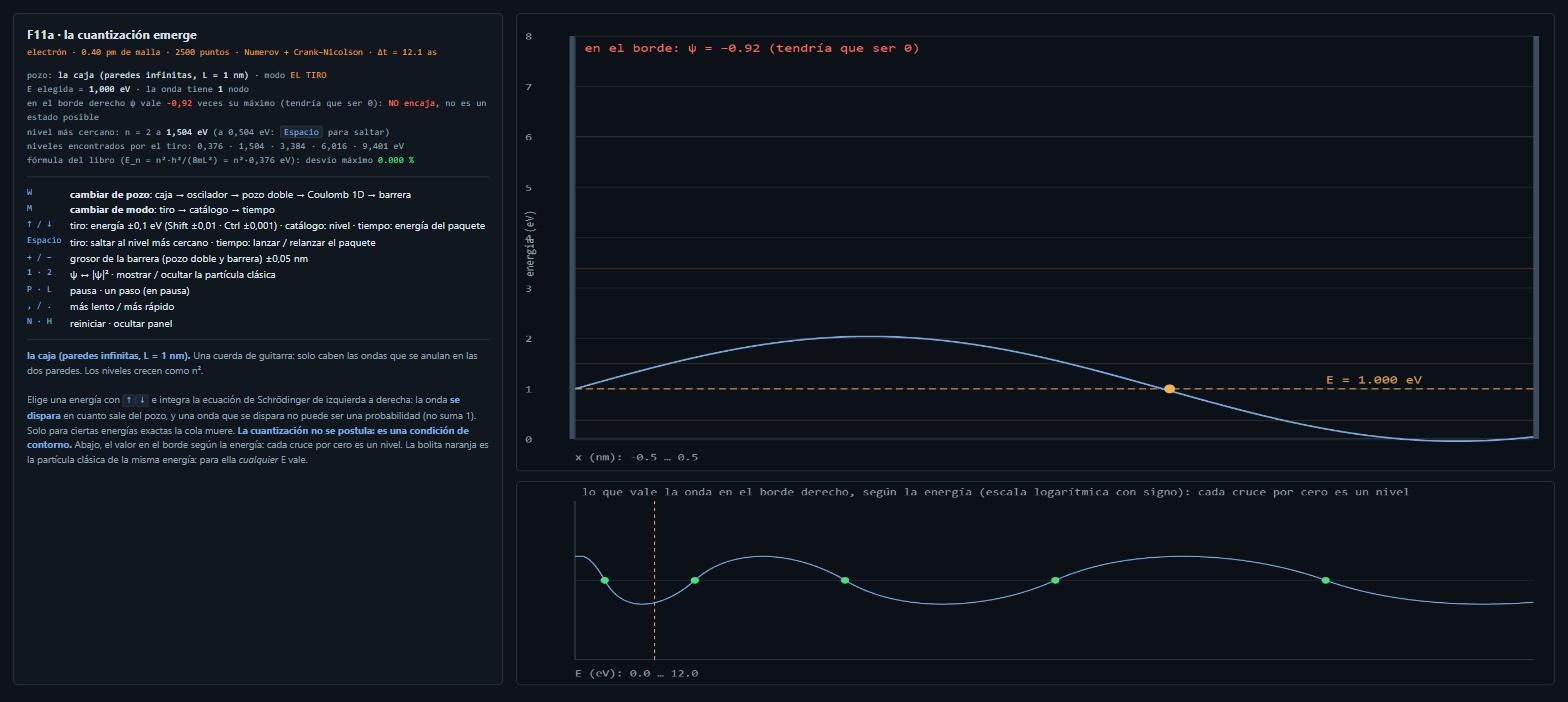
Por qué el electrón solo puede tener ciertas energías
Elige una energía cualquiera e integra la ecuación de Schrödinger de izquierda a derecha: la onda se dispara en cuanto sale del pozo, y una onda que se dispara no puede ser una probabilidad. Solo para ciertas energías exactas la cola muere. La cuantización no se postula: es una condición de contorno, y aquí la ves aparecer con una tecla. Cinco pozos (caja, muelle, pozo doble, Coulomb 1D, barrera), tres modos (el tiro, el catálogo de niveles y el tiempo) y la bolita clásica al lado, para la que cualquier energía vale.
- la caja da 0,376 · 1,504 · 3,384 · 6,016 eV: la fórmula n²h²/8mL² con cinco decimales; el muelle, niveles equiespaciados exactos
- túnel: un electrón de 2 eV contra 3 eV atraviesa el 18,9 % de las veces; la fórmula exacta promediada sobre el paquete dice 18,6 %
- Δx·Δp arranca en 0,5 ħ y crece; en la caja el paquete se deshace y renace entero cada h/E₁ = 11 fs
Numerov y Crank–Nicolson en JavaScript, sin servidor. Los anillos verdes del catálogo son el mismo cálculo hecho en Python con qmsolve (f11_onda.py).
Electrones, espín, Pauli, radiación y núcleo, con cuántica de verdad
Entrar en el átomo con las reglas de siempre: declarar lo mínimo (la ecuación de Schrödinger y el Coulomb del núcleo) y mirar emerger lo demás: la cuantización, los orbitales y sus nodos, el espectro del hidrógeno, las dos manchas de Stern–Gerlach, por qué rige Pauli y de dónde sale el muro que el laboratorio lleva pintado a mano desde F2, la tabla periódica, la curva de enlace nuclear y la radiactividad como efecto túnel. Ocho visores, de onda.html a proton.html.
- cuatro librerías cuánticas instaladas y verificadas hoy: QuTiP, qmsolve, SymPy y pyqint (Hartree–Fock)
- controles ya hechos: niveles del hidrógeno emergiendo a −13,604 eV en 0,1 s; Stern–Gerlach 1006/994; H₂ a −1,1168 hartree; el diente de sierra de la ionización He–Ar
- estado: F11a entregada (onda.html, la tarjeta de al lado); siguiente F11b, el átomo de hidrógeno
Dos escalas de tiempo nuevas: attosegundos para el electrón y de microsegundos a miles de millones de años para el núcleo. Cada subfase irá apareciendo con su propia tarjeta.
Documentos
Del átomo al cromosoma
El análisis completo en página navegable: la química del ADN (bases, hélice, cromatina, medio) y la física del simulador (campo de fuerzas(1), paredes, campos, arquitectura, hoja de ruta), con 8 diagramas propios y biblioteca comentada.
Cuaderno de preguntas
Las preguntas conceptuales del proyecto y sus respuestas condensadas, ahora en página navegable con imágenes de los experimentos y enlaces cruzados al documento grande. Crece con cada sesión.
Sal, presión, ósmosis, electricidad y Debye
El plan de desarrollo de soluciones.html: un cristalito de sal deshaciéndose, un manómetro en la burbuja, paredes virtuales para la ósmosis, un campo eléctrico con teclas y el apantallamiento(1) emergiendo de iones reales. Con el número que valida cada experimento, su vía de rigor en OpenMM y la versión de cocina segura.
Cómo levantar el laboratorio
Doble clic en abrir_laboratorio.bat: arranca el servidor local y abre este índice. El README explica el porqué y las alternativas.